
9. シアル酸分子のかたちを識別できるウイルス
シアル酸分子のかたち(分子種)を識別できるインフルエンザウイルス
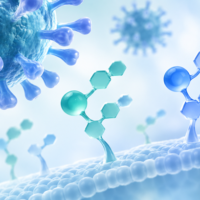
世界中で、ヒトや動物の集団で循環しているインフルエンザAウイルスは、その急速な進化と種を超えて感染する可能性のために、依然として重大な公衆衛生上の懸念となっています。インフルエンザAウイルスは、宿主細胞表面に存在するシアル酸含有糖鎖を受容体(レセプター)として認識し、感染を開始します。
これまで、インフルエンザウイルスの宿主特異性は主としてシアル酸とガラクトースの結合様式、すなわち鳥型受容体(シアル酸α2-3Gal)とヒト型受容体(シアル酸α2-6Gal)の違いによって説明されてきました。
しかし近年、シアル酸そのもののかたち(分子種)の違い、すなわちシアル酸の2大分子種であるN-アセチルノイラミン酸(Neu5Ac)とN-グリコリルノイラミン酸(Neu5Gc)の違いも、重要な宿主域決定因子であることが明らかになってきました。
Neu5Gcは、Neu5AcのN-アセチル基がN-グリコリル基に置き換わったシアル酸です。
多くの哺乳類では合成されますが、ヒトではCMAH(Cytidine monophospho-N-acetylneuraminic acid hydroxylase)遺伝子が機能を失っているため、合成できません。
このため、Neu5Gc認識能は、インフルエンザウイルスの宿主適応や種間伝播を理解するうえで重要な研究対象となっています。
静岡県立大学名誉教授・鈴木康夫
ウマインフルエンザウイルス
Neu5Gc認識が最も明確に示されているのはウマインフルエンザウイルスです。H7N7亜型(A/equine/New York/49/73)は、Neu5Gcを含む糖鎖に対して高い親和性を示すことが糖鎖アレイ解析によって明らかにされました。
感染機構は一般的なインフルエンザウイルスと同様です。まず、HAが宿主細胞表面のNeu5Gc含有糖鎖に結合します。続いてウイルスはエンドサイトーシスによって細胞内へ取り込まれます。エンドソーム/ライソゾーム内の酸性化によりHAの立体構造が変化し、ウイルス膜とエンドソーム/ライソゾーム膜が融合します。
その結果、ウイルスRNAが細胞内へ放出され、感染が成立します。感染後期にはノイラミニダーゼ(NA)が細胞表面のシアル酸を切断し、新しく形成されたウイルス粒子の放出を促進します。
ブタインフルエンザウイルス
ブタの気道上皮にはNeu5AcとNeu5Gcの両方が存在しています。そのため、ブタは「混合容器(mixing vessel)」と呼ばれ、鳥インフルエンザウイルスとヒトインフルエンザウイルスの双方に感染することができます。
この特徴は、新型インフルエンザウイルスの出現において重要な意味を持っています。異なる宿主由来のウイルスがブタ体内で共感染すると、遺伝子再集合が起こり、新しいウイルスが誕生する可能性があるためです。
鳥インフルエンザウイルス
鳥類は通常Neu5Gcを合成しないため、鳥インフルエンザウイルスの多くはNeu5Acα2-3Gal受容体を利用しており、今のところ明確にNeu5Gcに結合する鳥インフルエンザウイルスは報告されていません。
しかし近年、H7亜型の鳥インフルエンザウイルスHAに特定のアミノ酸変異を起こさせると、少数の変異によってNeu5Gc認識能を獲得できることが示されました。
特にH5N1ウイルスでは、受容体結合部位周辺の変異によってNeu5Gcを認識できるようになることが報告されています。これは、鳥ウイルスが哺乳類宿主へ適応する過程を理解するうえで重要な知見です。
鳥インフルエンザウイルスのNeu5Gc認識の獲得は、ヘマグルチニンのレセプター結合サイト(RBS)のアミノ酸置換によってNeu5Gcの立体配置を許容する「空間的適合性(steric accommodation)」が主因とされています。
ヒトインフルエンザウイルス
ヒトはNeu5Gcを生合成できません。ヒトから分離された季節性インフルエンザウイルスは、Neu5Gcを豊富に持つウマでは複製できません。その分子基盤の一端が明らかにされました。
私達は2000年に、ヒト型レセプターであるNeu5Acα2-6Galを認識する一方、鳥型レセプターであるNeu5Acα2-3Galおよびウマの気道に豊富に存在するNeu5Gcα2-3Galを認識しないHAを持つヒトインフルエンザウイルス株(A/Udorn/307/72(H3N2))は、ウマで複製できないこと、一方、Neu5Gcα2-3Galを認識するHAを持つウマインフルエンザウイルス株(A/equine/Kentucky/1/91(H3N8))はウマの気道で複製可能であることを確認しました。
同時に、生化学的・免疫組織化学的解析およびレクチン結合アッセイにより、ウマの気管上皮細胞にはNeu5Gcα2-3Gal構造が豊富に存在することを確認しました。
つまり、宿主の標的組織・細胞に豊富に存在するシアル酸分子種およびシアル酸結合様式(2-3、2-6)と一致するレセプター結合特異性を持つインフルエンザウイルスが、宿主動物における伝播を担っていることを明らかにしました。
また、ヒトから分離された高病原性H5N1インフルエンザウイルスのヘマグルチニンY161A変異株は、Neu5Gcに結合することが糖鎖アレイ解析により報告されています。
さらに、興味深いことに、Neu5Ac含有シアロ糖鎖には結合し、Neu5Gc含有シアロ糖鎖には結合できないヒトインフルエンザウイルス株(A/Memphis/1/71(H3N2))のヘマグルチニンに人工的遺伝子変異を導入すると、N-グリコリルノイラミン酸を持つ糖鎖に結合できるようになります。
すなわち、155番目のThr→Tyr置換、および158番目のGlu→Gly置換、さらに137、144、193番目のアミノ酸残基が、主要な2種類のシアル酸分子種(Neu5Ac、Neu5Gc)のうち、Neu5Gcへの結合性を高めるうえで決定的な役割を果たすことも明らかにされています。
宿主域決定因子としてのNeu5Gc
これまでインフルエンザウイルスの宿主特異性は、主としてα2-3結合型受容体とα2-6結合型受容体の違いによって説明されてきました。しかし現在では、シアル酸と糖鎖の結合様式(α2-3、α2-6)とシアル酸の分子種(Neu5Ac、Neu5Gc)という二重の受容体選択機構が存在すると考えられています。
ヒトはNeu5Gcを合成できないため、Neu5Gcに強く依存するウイルスはヒトへ適応しにくいと考えられています。一方、ウマやブタではNeu5Gcが豊富に発現しているため、Neu5Gc認識能は宿主域の形成に重要な役割を果たしています。
このように、Neu5Gcは従来のα2-3/α2-6結合様式に加えて、インフルエンザウイルスの宿主特異性を決定する「第二の種の壁(species barrier)」として注目されています。
おわりに
Neu5Gc認識能に関する研究は、インフルエンザウイルスの宿主適応機構や種間伝播機構を理解するうえで新たな視点を提供しています。特にウマインフルエンザウイルスではNeu5Gcが主要な受容体として機能しており、ブタインフルエンザウイルスではNeu5AcとNeu5Gcの両方が利用されています。
また、一部の鳥インフルエンザウイルスでは少数の変異によってNeu5Gc認識能を獲得できることが示されています。今後、Neu5Gc認識機構の解明が進むことで、新たな宿主への適応やパンデミック発生リスクを予測するための重要な手がかりが得られるものと期待されています。
静岡県立大学名誉教授・鈴木康夫
参考文献
Suzuki Y. Sialobiology of influenza: molecular mechanism of host range variation of influenza viruses. Biol Pharm Bull. 2005 Mar;28(3):399-408. doi: 10.1248/bpb.28.399. PMID: 15744059.
Nongluk Sriwilaijaroen, Yasuo Suzuki, Recent progress in research on receptor binding specificity of influenza A virus hemagglutinins. glycoforum.22A (2019 Vol.22 (4), A12) DOI:10.32285/ 12J
Thompson AJ, Paulson JC. Adaptation of influenza viruses to human airway receptors. J Biol Chem. 2021 Jan-Jun;296:100017. doi: 10.1074/jbc.REV120.013309. Epub 2020 Nov 22. PMID: 33144323; PMCID: PMC7948470.
Wu NC, Wilson IA. Structural Biology of Influenza Hemagglutinin: An Amaranthine Adventure. Viruses. 2020 Sep 22;12(9):1053. doi: 10.3390/v12091053. PMID: 32971825; PMCID: PMC7551194.
Kristensen C, Larsen LE, Trebbien R, Jensen HE. The avian influenza A virus receptor SA-α2,3-Gal is expressed in the porcine nasal mucosa sustaining the pig as a mixing vessel for new influenza viruses. Virus Res. 2024 Feb;340:199304. doi: 10.1016/j.virusres.2023.199304. Epub 2024 Jan 3. PMID: 38142890; PMCID: PMC10793167.